- 01
主要发现:caspase-3 在 D270 位点切割 DFNA5(GSDME),其 N 端片段执行坏死性膜破裂——继发性坏死是程序化事件;
- 02
关键机制:与 GSDMD 同构——caspase-3 解除 DFNA5 的 C 端自抑制,释放带膜靶向结构域的 N 端片段,从膜内侧打孔;
- 03
研究意义:统一凋亡与焦亡的终末形态,解释凋亡细胞未被清除时为何释放炎症内容物。
本文目录
一、这篇文章回答了什么
凋亡细胞若没被及时清除,最终会肿胀、破膜、漏出内容物,即继发性坏死。它看起来和焦亡几乎一样,却一直被当作被动的渗透压崩解。作者的切入点是一个反常观察:casp-1/11 双敲除的巨噬细胞没有炎性 caspase,也就没有 GSDMD 焦亡,感染 VSV 后照样胀破、大量释放 LDH;坏死性凋亡抑制剂不能阻断,泛 caspase 抑制剂 zVAD 可以。是哪个 caspase、切割了什么底物,造成了这场没有 GSDMD 的焦亡样死亡?
二、论证逻辑梳理
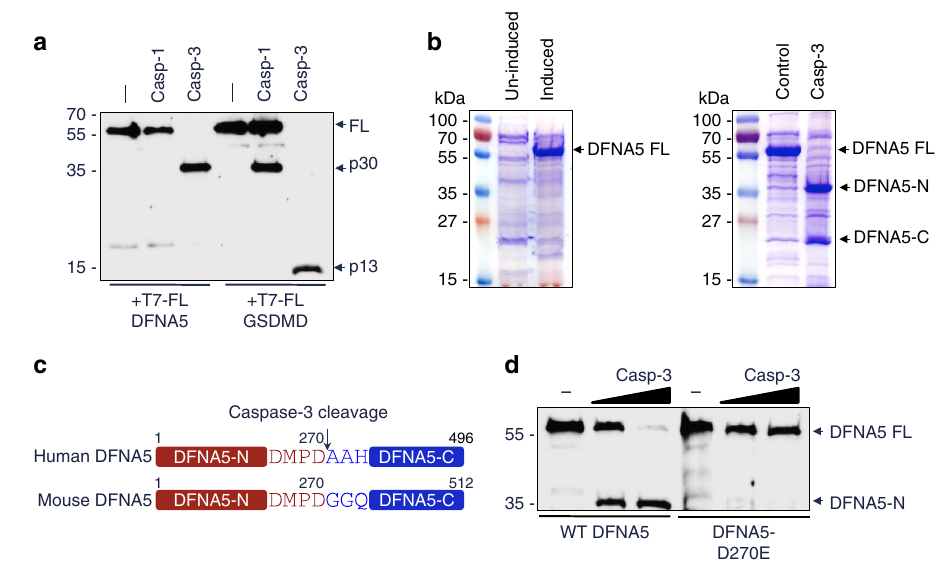
第一步:鉴定底物(图 1–2)。候选分子来自人类遗传学的提示:DFNA5 的致聋突变恰好把蛋白截短在 N 端附近,提示这个 N 端可能像 GSDMD-N 一样有细胞毒性。作者在体外用所有人源 caspase 逐一处理 DFNA5,发现只有 caspase-3 能高效切割,caspase-1 不能;D270E 突变完全抵抗切割。作者进一步用 S100 裂解液加细胞色素 c 激活内源凋亡小体,发现同样只切野生型、不切 D270E;在 caspase-3 缺陷的 MCF7 细胞中切割消失,回补 caspase-3 后恢复。以上结果表明,DFNA5 是凋亡通路下游的生理性底物。
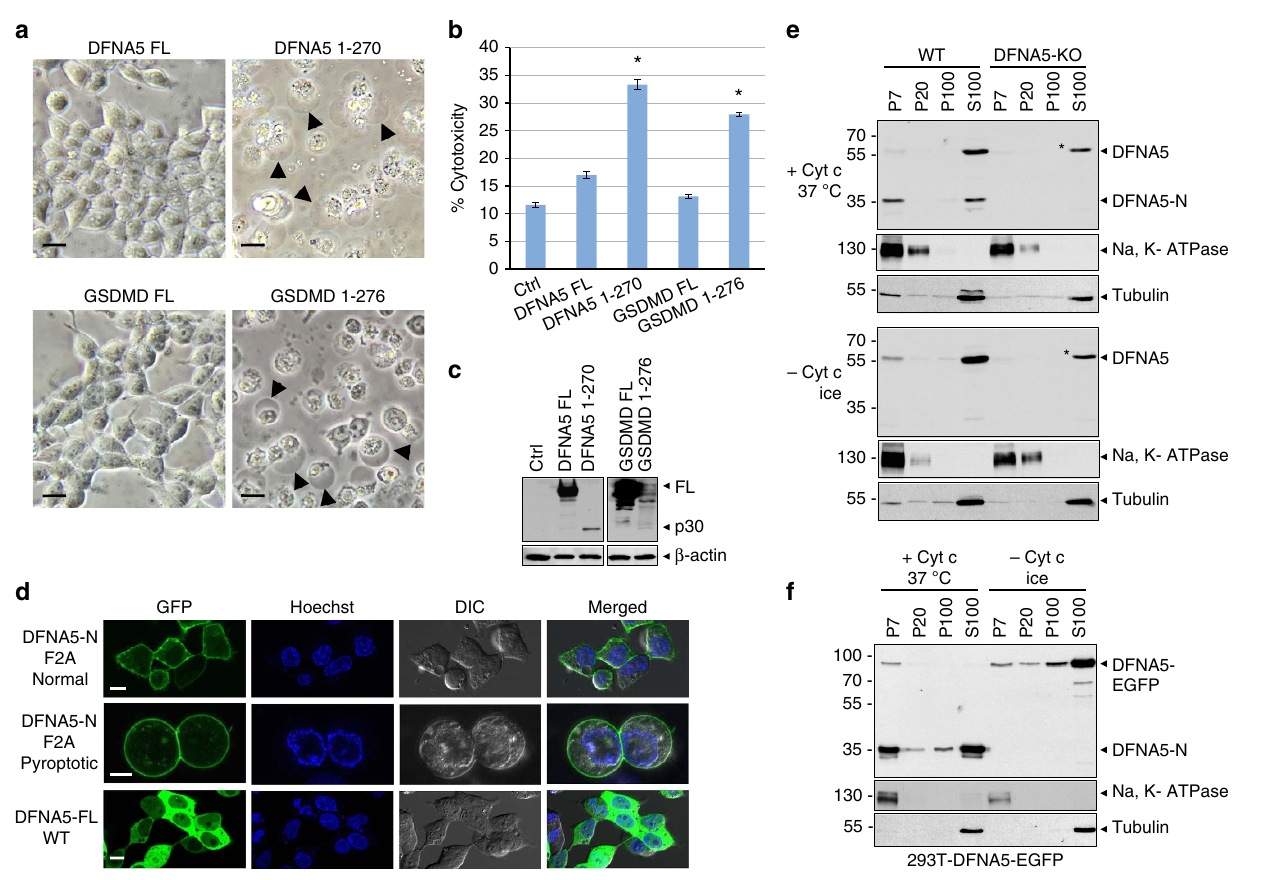
第二步:证明 N 端片段有细胞毒性并靶向质膜(图 3–4)。作者在细胞中表达 DFNA5-N 片段,发现足以使细胞胀破死亡,全长蛋白不能,且 zVAD 不能阻断,说明该片段是毒性执行者,不需要其他 caspase 参与。借助毒性减弱的 F2A 突变体,作者在显微镜下观察到 DFNA5-N 定位于质膜,全长蛋白则分布在胞质。同源建模显示 N 端 1–56 位残基构成膜靶向结构域,突变其中的碱性区域后,该片段既不能上膜也不能杀死细胞。
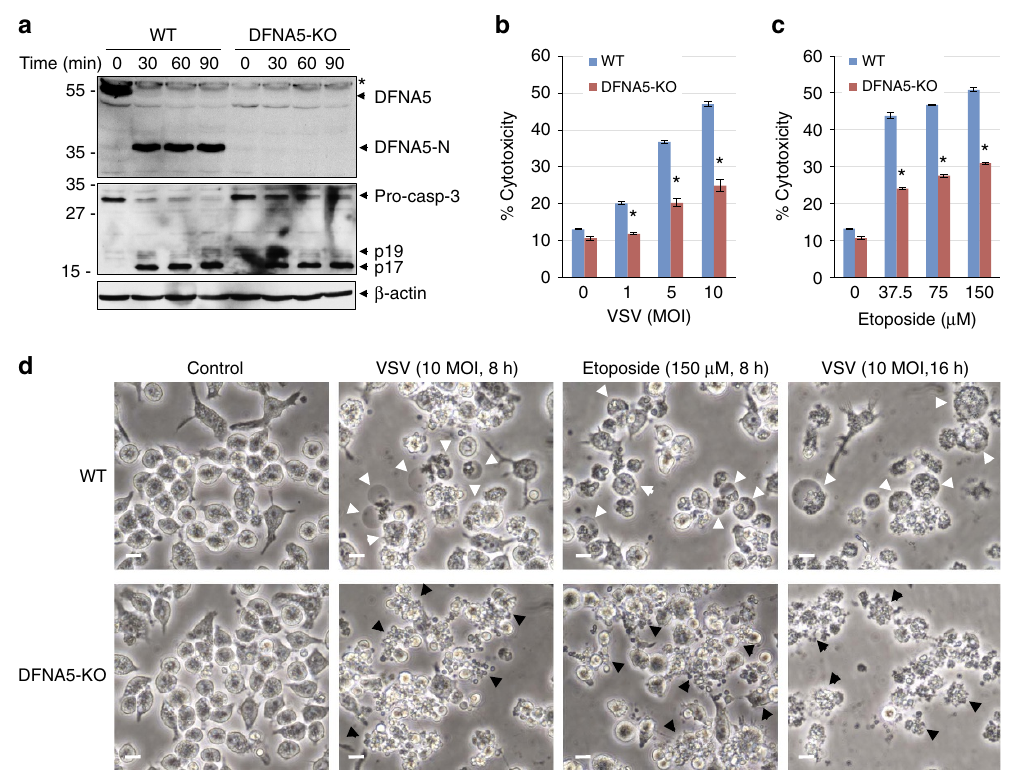
第三步:接回凋亡通路并用敲除小鼠验证(图 5–8)。作者在回补野生型或 D270E 突变型 DFNA5 的细胞中用 Bax 或活化 caspase-3 诱导凋亡,发现回补野生型的细胞大量释放 LDH,回补 D270E 的细胞不破膜。以上结果表明,凋亡末期的破膜由 DFNA5 而非 GSDMD 承担。作者进一步用 DFNA5 敲除小鼠的巨噬细胞验证:VSV 感染或 etoposide 处理后,敲除细胞的继发性坏死显著减少;延时成像显示两种细胞都启动凋亡,但只有野生型进展到破膜。
结论:继发性坏死不是被动的渗透压崩解,而是 caspase-3–DFNA5 轴执行的程序化终末阶段;凋亡与焦亡在破膜这一步共享同一套 gasdermin 机制。
三、对实验的启示
- 从异常表型反推底物:双敲细胞照常坏死是研究起点;"坏死性凋亡抑制剂无效、zVAD 有效"把范围压缩到非炎性 caspase,再体外筛选底物——表型驱动的底物发现路径值得借鉴。
- 人类遗传病突变是功能线索:DFNA5 致聋突变恰好制造 C 端截短体,提示"N 端有毒性、C 端管抑制";研究功能未知的基因,先查其致病突变的结构后果。
- 解读凋亡终末读数要想到继发性坏死:凋亡实验晚期的 LDH/PI 阳性可能来自 DFNA5 介导的程序性破膜;细胞是否表达 DFNA5/GSDME,决定同一份凋亡刺激呈现"安静"还是"炎症性"结局。
四、站内文献关联
- 延伸|GSDMD 是焦亡执行者(He 2015, Cell Res):炎性 caspase 切割 GSDMD 执行焦亡,凋亡 caspase-3 切割 DFNA5 执行继发性坏死,同一套"N 端杀伤、C 端自抑制"的架构服务两条死亡通路。
- 延伸|gasdermin 通透线粒体放大 caspase-3(Rogers 2019, Nat Commun):本文证明 DFNA5 决定凋亡细胞破不破膜,2019 年文进一步证明 GSDME-N 还通透线粒体、放大 caspase-3 激活本身——两篇合起来是 GSDME 功能的完整图景。
- 延伸|caspase-1 经 Bid 启动凋亡(Tsuchiya 2019, Nat Commun):Tsuchiya 文中 GSDMD 缺失细胞的凋亡后继发坏死由 caspase-3–GSDME 执行,与本文机制一致。
- 对照|GSDME 亚裂解释放 IL-1β(Zhou & Abbott 2021, Cell Rep):本文把 GSDME 定为凋亡后继发坏死的执行者;Zhou & Abbott 用内源表达水平证明 GSDME 的常态是亚裂解的 IL-1β 释放通道,只有高表达才走向焦亡——表达量决定 GSDME 的结局。
(以上跨论文比较为综合解释,非任一原文的直接结论。)
这篇论文还没有回答什么
局限(两点):① DFNA5-N 的成孔机制由同源建模推断,未直接展示孔道结构或膜脂结合实验;② 全部证据来自细胞体系,继发性坏死的体内炎症后果未做动物模型验证。
Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death
Rogers, Corey; Fernandes-Alnemri, Teresa; Mayes, Lindsey; Alnemri, Diana; Cingolani, Gino; Alnemri, Emad S. Nature Communications. 2017;8:.
文中配图来自资料库中已核实的原论文,保留原图标识、坐标与对照;图号和来源见资料库登记。
参考文献
- Rogers C, Fernandes-Alnemri T, Mayes L, Alnemri D, Cingolani G, Alnemri ES. Cleavage of DFNA5 by caspase-3 during apoptosis mediates progression to secondary necrotic/pyroptotic cell death. Nature Communications. 2017;8:14128. doi:10.1038/ncomms14128
- Wang Y, Gao W, Shi X, et al. Chemotherapy drugs induce pyroptosis through caspase-3 cleavage of a gasdermin. Nature. 2017;547(7661):99-103.
- He WT, Wan H, Hu L, et al. Gasdermin D is an executor of pyroptosis and required for interleukin-1β secretion. Cell Research. 2015;25(12):1285-1298.
- Kayagaki N, Stowe IB, Lee BL, et al. Caspase-11 cleaves gasdermin D for non-canonical inflammasome signalling. Nature. 2015;526(7575):666-671.
论文讨论
无需注册,昵称可留空