- 01
主要发现:蛋白质组学筛选出 20 个 caspase-1 下游切割底物,caspase-7 是其中之一;
- 02
关键机制:caspase-1 在 Asp23 和 Asp198 切割 procaspase-7 将其激活;炎症刺激下 caspase-7 的激活依赖 caspase-1 炎性小体,caspase-3 则不依赖;
- 03
研究意义:首次证明 NLR–caspase-1–caspase-7 级联的存在,揭示 caspase-3 与 caspase-7 在炎症刺激下激活机制的分叉。
本文目录
一、这篇文章回答了什么
caspase-1 除了切割 IL-1β 和 IL-18 前体之外还切什么?本文用差异蛋白质组学筛选给出答案:20 个候选底物中包括执行 caspase-7,caspase-1 直接在其经典激活位点切割并激活它;体内炎症条件下 caspase-7 的激活完全依赖 caspase-1 炎性小体,而同为执行 caspase 的 caspase-3 走的是另一条不依赖炎性小体的路。
二、论证逻辑梳理
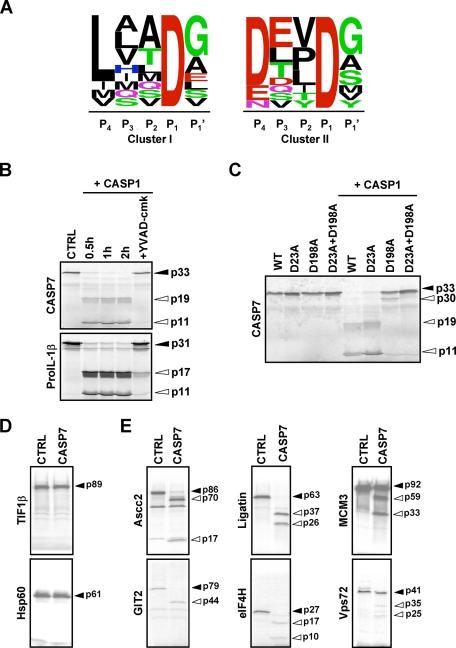
第一步:COFRADIC 筛选锁定 caspase-7,并暴露"级联污染"(图 1A,表 I–II)。作者用 SILAC 标记结合 COFRADIC(一种富集蛋白 N 端肽、能精确定位切割位点的蛋白质组学技术),比较重组 caspase-1 处理与未处理的巨噬细胞裂解液:2663 条肽段对应 1022 个蛋白,其中 20 个蛋白在 Asp 后被特异性切割(共 23 个位点)。切割位点分析分成两群:11 个(48%)像 caspase-1 在 pro-IL-1β 上的切割位点(P4 位为疏水脂肪族残基),caspase-7 就在这群,位点是其大小亚基间的 IQAD198;其余 12 个(52%)却像 caspase-7 偏好的 DEVD 序列。以上结果表明,外加的 caspase-1 激活了裂解液中的内源 caspase-7,筛出的一半切割事件是二级 caspase 所为。
第二步:体外验证 caspase-1 在经典激活位点切割 caspase-7(图 1B–E)。作者用 35S 标记的 procaspase-7 与 30 nM 重组 caspase-1 共孵育,发现 33 kDa 前体在 30 分钟内被完全加工为 p19/p11 活性亚基,caspase-1 抑制剂 YVAD-cmk 完全阻断;点突变定位显示切割发生在 Asp23(切除前结构域)和 Asp198(大小亚基间),双位点突变后不再加工。重组 caspase-7 能切割第二群底物(Assc2、GIT2、Ligatin、eIF4H、MCM3、Vps72),而 10 倍浓度也切不动第一群。以上结果表明,caspase-1 直接切割激活 caspase-7,第二群底物确由 caspase-7 间接产生。
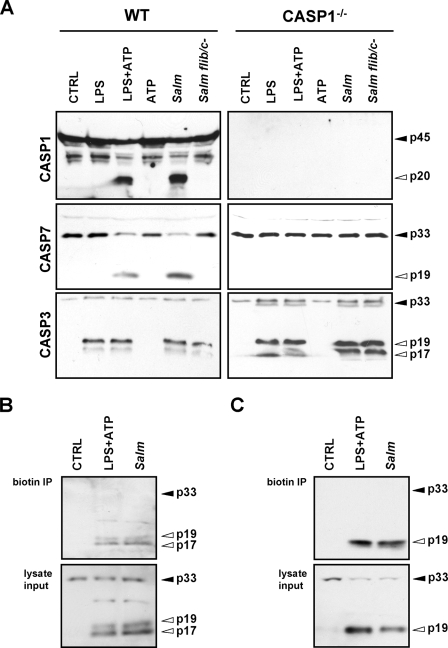
第三步:体内遗传证据——caspase-7 激活依赖 caspase-1 炎性小体,caspase-3 不依赖(图 2–5)。作者用系列敲除小鼠的骨髓来源巨噬细胞验证:LPS+ATP 或沙门氏菌感染能激活 caspase-7,但在 caspase-1、ASC 敲除细胞中完全消失;沙门氏菌诱导的 caspase-7 加工需要鞭毛蛋白和 Ipaf(即 NLRC4),LPS+ATP 则需要 Cryopyrin(即 NLRP3);而 caspase-3 在所有敲除细胞中照常激活(仅 LPS 即可)。生物素标记的 DEVD-fmk 探针拉下实验确认了活化 caspase-3(p17/p19)和 caspase-7(p19)的存在。以上结果表明,炎症刺激下 caspase-7 的激活由 NLR–caspase-1 炎性小体驱动,caspase-3 走独立路线。
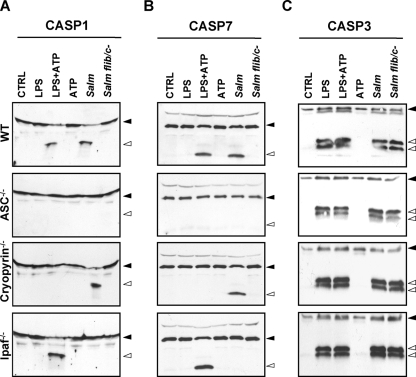
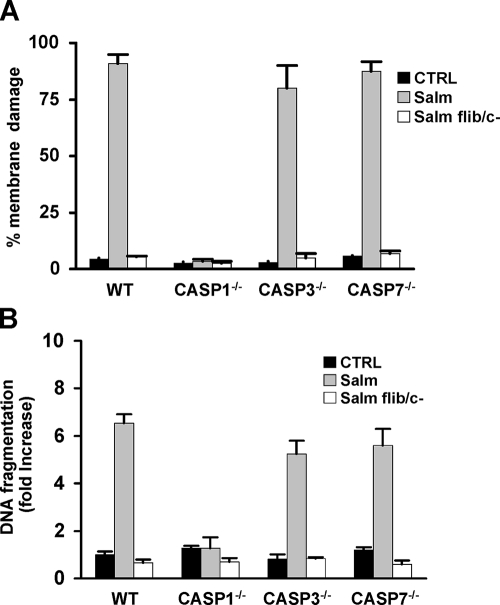
第四步:两条路线互不冗余,且都不是感染致死的执行者(图 3、6)。caspase-3 敲除不影响 caspase-1 和 caspase-7 的激活,caspase-7 敲除也不影响 caspase-1 和 caspase-3;而 caspase-3 或 caspase-7 敲除的巨噬细胞对沙门氏菌诱导的死亡均无保护。以上结果表明,该模型中 caspase-3 与 caspase-7 的激活机制非冗余,且二者单独都不是感染致死的必要执行者。
三、对实验的启示
- 裂解组学筛选要防"级联污染":直接底物和二级 caspase 的底物会混在一起,必须用切割位点 motif 分析先分群、再逐一回验证——本文 52% 的事件其实是 caspase-7 干的。
- caspase-7 激活可作 caspase-1 炎性小体活性的下游读数:炎症刺激下 caspase-7 加工依赖 caspase-1,caspase-3 加工不依赖——两个条带的信息量不同,不能混用。
- DEVD 类探针和抑制剂不分家:biotin-DEVD-fmk 同时标记 caspase-3 和 caspase-7,"DEVDase 活性"或 DEVD 抑制表型不能归因于单一 caspase。
四、站内文献关联
- 延伸|caspase-1 自我剪切终止炎性小体(Boucher 2018, J Exp Med):caspase-1 切割事件的功能二分——本文证明 caspase-1 在 Asp23/Asp198 切割并激活 caspase-7(传递信号),Boucher 证明 caspase-1 自我剪切产生 p20 使自身脱离炎性小体失活(终止信号)。
- 延伸|焦亡与凋亡双向串扰(Taabazuing 2017, Cell Chem Biol):本文确立 caspase-1 直接切割激活 caspase-7 的级联;Taabazuing 证明 GSDMD 缺失时 caspase-1 激活 caspase-3/7 会把细胞从焦亡带向凋亡——本文的级联是其生化基础。
- 对照|效应 caspase 反馈放大凋亡信号(McComb 2019, Sci Adv):本文发现炎性小体下游 caspase-7 的激活依赖 caspase-1 而 caspase-3 不依赖(机制分叉);McComb 证明凋亡中 caspase-3/-7 功能完全冗余——同一对效应 caspase 在不同通路中的关系并不相同。
(以上跨论文比较为综合解释,非任一原文的直接结论。)
这篇论文还没有回答什么
局限:① 筛选在裂解液中进行,外加 400 nM caspase-1 高于生理浓度,底物谱可能包含体外特有位点;② caspase-7 被炎性小体激活后的生理功能在本文中未明确(不保护也不加重感染致死),其下游底物的意义留待后续研究。
Targeted Peptidecentric Proteomics Reveals Caspase-7 as a Substrate of the Caspase-1 Inflammasomes
Mohamed Lamkanfi; Thirumala-Devi Kanneganti; Petra Van Damme; Tom Vanden Berghe; Isabel Vanoverberghe; Joël Vandekerckhove; Peter Vandenabeele; Kris Gevaert; Gabriel Núñez Molecular & Cellular Proteomics. 2008;7:2350-2363.
原论文 PDF 由用户补充,核对题名、作者、DOI 与完整 Figure 后原样收纳;文中原图为已核实的论文原图,标识、坐标与对照保持。蓝灰封面为本站独立绘制机制示意,来源分开登记。
参考文献
- Lamkanfi M, Kanneganti TD, Van Damme P, et al. Targeted peptidecentric proteomics reveals caspase-7 as a substrate of the caspase-1 inflammasomes. Mol Cell Proteomics. 2008;7(12):2350-2363. doi:10.1074/mcp.M800132-MCP200
- Mariathasan S, Newton K, Monack DM, et al. Differential activation of the inflammasome by caspase-1 adaptors ASC and Ipaf. Nature. 2004;430(6996):213-218. doi:10.1038/nature02664
论文讨论
无需注册,昵称可留空